
Les valeurs ci-dessous proviennent de populations et de conditions expérimentales différentes. Elles ne constituent pas des intervalles cliniques universels, des objectifs de reproduction ni des doses de médicaments.
L’Octodon degus est un rongeur diurne d’Amérique du Sud. De taille moyenne, il reste l’un des plus petits caviomorphes de ce continent. Il s’agit d’un rongeur assez particulier, souvent confondu avec d’autres espèces d’animaux de compagnie comme les gerbilles ou les chinchillas. Sa physiologie lui a permis de s’adapter dans un milieu semi-aride en adoptant un mode de vie crépusculaire et en vivant dans des terriers.
Morphologie
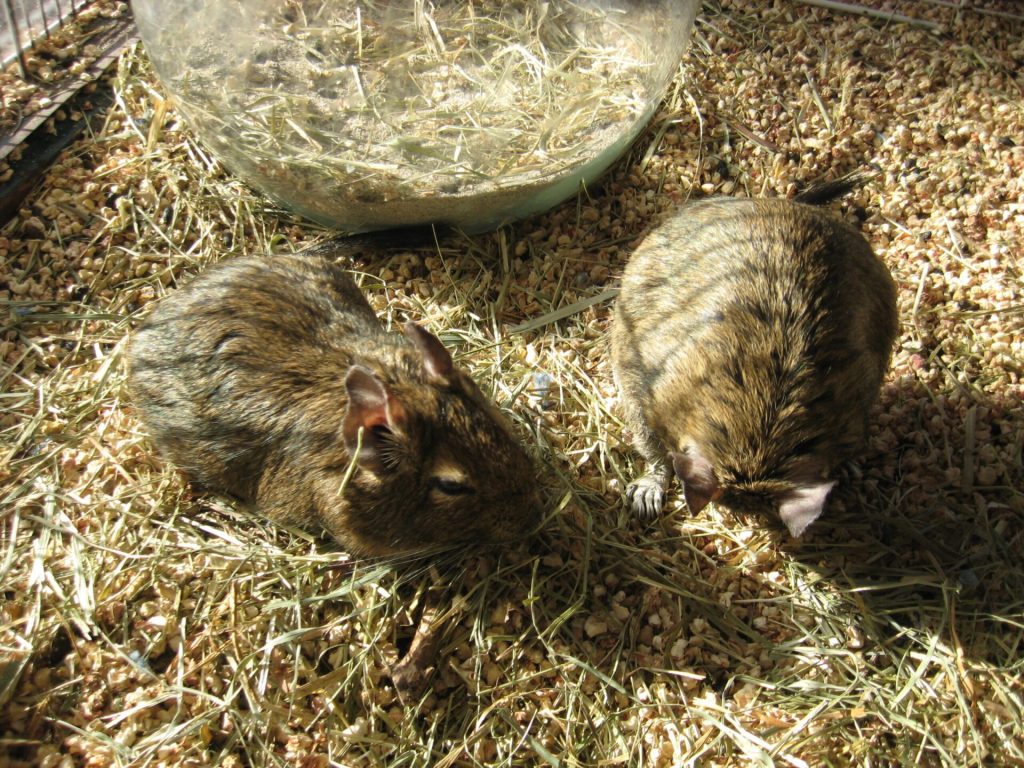
L’Octodon degus est un rongeur de taille moyenne d’apparence trapue. Sa tête est assez forte et pourvue d’yeux en amande ainsi que de deux grandes oreilles qui lui permettent de détecter les prédateurs. Son corps est taillé pour creuser et se déplacer rapidement. Il est doté de pattes puissantes avec 5 doigts, dont le dernier est à peine développé. Fouisseur 1, il se sert de ses griffes pour creuser son terrier. Sa queue est presque aussi longue que son corps et se termine par un petit pinceau de poils. Les octodons n’ont pas une morphologie strictement adaptée à la vie en terrier : ils se servent notamment beaucoup de leur vision, mais ont un mode de vie semi-fossoriel 2. L’octodon ne présente pas non plus de dimorphisme sexuel.
Données physiologiques
Physique
Longueur totale de l’adulte queue comprise : 250 mm – 310 mm Longueur totale du corps de l’adulte queue non comprise : 150 mm Longueur de la queue : 65 mm – 130 mm
Poids moyen adulte : 170 g – 230 g
Poids idéal en captivité : 180 g – 250 g
Taille des oreilles (hauteur) : 24 mm – 32 mm
Longueur de la patte arrière : 35 mm – 38 mm
Âge adulte : 54 semaines – 1 an
Espérance de vie de l’octodon en captivité : 5 – 9 ans
Espérance de vie de l’octodon à l’état sauvage : ≤ 2 ans
Physiologique
Température corporelle : 36,0°C – 37,9°C (96,8°F – 100,2°F), il s’agit de la température corporelle la plus basse chez les espèces de l’infra-ordre des caviomorphes 3. Température en période d’oestrus (chaleur): ≈ +0,4 °C 4 Zone de neutralité thermique : 23°C – 32°C (73°F – 89°F) Température minimale avant activité en dehors du terrier: 24 ºC 5
Cæcum différencié: 33,60 % spécifique
Cæcum haustré: 79,65 % spécifique
Estomac glandulaire: 36,25 % de spécificité
Épaisseur médullaire relative: 6,1
Hématologie
Interprétation des tableaux : ces données concernent des échantillons publiés, pas des intervalles cliniques universels. † signale des totaux discordants avec les effectifs par âge affichés ; les chiffres originaux sont conservés en attente de confirmation. ‡ signale une incohérence déjà présente dans le tableau sanguin publié. Un intervalle de confiance de la moyenne n’est pas un intervalle de référence individuel. Le vétérinaire doit tenir compte du prélèvement et des méthodes du laboratoire.
| Juvéniles | Adultes | ||||||||
|---|---|---|---|---|---|---|---|---|---|
| Paramètre | Moyenne (±ÉT) | Médiane | Fourchette | 95% IC valeurs moyennes | Moyenne (±ÉT) | Médiane | Fourchette | 95% IC valeurs moyennes | Effet du vieillissement |
| Globule rouge (x 10^12/l) | 7,3 (1,08) | 7,60 | 4,72 - 9,01 | 6,89 - 7,64 | 8,7 (1,02) | 8,98 | 5,34 - 9,93 | 8,35 - 9,06 | ***↑ |
| Réticulocyte (x 10^9/l) | 7,4 (16,27) | 0,0 | 0,0 - 80,24 | 1,69 - 13,03 | 0,2 (1,23) | 0,0 | 0,0 - 7,41 | -0,23 - 0,66 | *↓ |
| % | 0,1 (0,32) | 0,0 | 0,0 - 1,7 | 0,02 - 0,24 | 0,0 (0,02) | 0,0 | 0,0 - 0,1 | 0,0 - 0,01 | NS |
| Hémoglobine (g/l) | 113,7 (9,57) | 116,0 | 89,0 - 134,0 | 110,4 - 117,0 | 117,6 (7,73) | 119,0 | 99,0 - 131,0 | 114,9 - 120,3 | NS |
| Hématocrite (l/l) | 0,4 (0,04) ‡ | 0,40 | 0,32 - 0,51 | 0,42 - 0,44 | 0,5 (0,03) ‡ | 0,46 | 0,37 - 0,50 | 0,44 - 0,46 | *↑ |
| VGM (fl) | 59,9 (5,41) | 58,6 | 52,30 - 75,30 | 58,01 - 61,78 | 51,4 (3,15) | 51,0 | 47,20 - 64,50 | 50,26 - 52,45 | ***↓ |
| MCH (pg) | 15,8 (1,52) | 15,70 | 13,60 - 19,50 | 15,31 - 16,37 | 13,4 (0,62) | 13,3 | 12,3 - 15,4 | 13,16 - 13,59 | ***↓ |
| MCHC (g/l) | 264,5 (10,43) | 264,0 | 240,0 - 291,0 | 260,8 - 268,1 | 261,0 (11,36) | 263,0 | 226,0 - 289,0 | 257,0 - 264,9 | NS |
| Plaquettes (x 10^9/l) | 453,4 (142,25) | 455,0 | 57,0 - 896,0 | 403,9 - 503,0 | 383,0 (78,17) | 362,0 | 223,0 - 530,0 | 233,7 - 410,2 ‡ | *↓ |
| Leucocyte (x10^9/l) | 7,2 (3,04) | 7,0 | 2,0 - 12,30 | 6,10 - 8,22 | 7,4 (2,40) | 7,1 | 3,5 - 14,6 | 6,55 - 8,23 | NS |
| Neutrophiles non segmentés (x10^9/l) | 0,1 (0,20) | 0,03 | 0,0 - 1,0 | 0,03 - 0,17 | 0,0 (0,07) | 0,0 | 0,0 - 0,31 | 0,1 - 0,06 ‡ | NS |
| % | 1,0 (1,37) | 0,05 | 0,0 - 6,0 | 0,52 - 1,48 | 0,4 (0,73) | 0,0 | 0,0 - 3,0 | 0,15 - 0,65 | NS |
| Neutrophiles segmentés (x10^9/l) | 2,2 (1,17) | 2,05 | 0,38 - 4,80 | 1,82 - 2,63 | 3,1 (1,48) | 2,89 | 0,70 - 7,01 | 2,53 - 3,58 | NS |
| % | 32,0 (13,07) | 30,0 | 11,0 - 63,0 | 27,47 - 36,58 | 40,6 (13,09) | 40,5 | 19,0 - 72,0 | 35,95 - 45,22 | *↑ |
| Lymphocytes (x10^9/l) | 4,6 (2,39) | 4,42 | 0,96 - 10,2 | 3,76 - 5,43 | 4,0 (1,40) | 3,9 | 1,27 - 7,26 | 3,53 - 4,52 | NS |
| % | 63,2 (13,57) | 66,0 | 33,0 - 85,0 | 58,47 - 67,93 | 54,9 (12,7) | 54,0 | 27,0 - 77,0 | 50,38 - 59,38 | *↓ |
| Monocytes (x10^9/l) | 0,1 (0,12) | 0,09 | 0,0 - 0,41 | 0,09 - 0,17 | 0,1 (0,20) | 0,07 | 0,0 - 0,89 | 0,06 - 0,20 | NS |
| % | 1,9 (1,62) | 1,0 | 0,0 - 5,0 | 1,29 - 2,42 | 1,3 (1,51) | 1,0 | 0,0 - 6,0 | 0,79 - 1,86 | NS |
| Éosinophiles (x10^9/l) | 0,1 (0,12) | 0,09 | 0,0 - 0,47 | 0,07 - 0,15 | 0,2 (0,26) | 0,15 | 0,0 - 1,45 | 0,12 - 0,3 | NS |
| % | 1,8 (1,85) | 1,0 | 0,0 - 8,0 | 1,13 - 2,42 | 2,6 (2,67) | 2,0 | 0,0 - 12,0 | 1,67 - 3,56 | NS |
| Basophiles (x10^9/l) | 0,0 (0,03) | 0,0 | 0,0 - 0,12 | 0,0 - 0,02 | 0,0 (0,04) | 0,0 | 0,0 - 0,19 | 0,0 - 0,03 | NS |
| % | 0,1 (0,40) | 0,0 | 0,0 - 2,0 | 0,0 - 0,25 | 0,2 (0,45) | 0,0 | 0,0 - 2,0 | 0,02 - 0,34 | NS |
| * P<0,05; ** P<0,01; *** P<0,001 | |||||||||
| ↑ Valeurs plus élevées chez les adultes que chez les jeunes. | |||||||||
| ↓ Valeurs plus faibles chez les adultes que chez les jeunes. | |||||||||
| ÉT - Écart type IC - Intervalle de confiance MCH - Hémoglobine corpusculaire moyenne MCHC - Concentration corpusculaire moyenne d'hémoglobine MCV - Volume corpusculaire moyen NS - Non significatif | |||||||||
| ‡ Cette valeur ou son intervalle présente une incohérence ou un arrondi important dans le tableau publié. Reproduction telle qu’imprimée, sans validation indépendante. ÉT=écart type ; IC=intervalle de confiance de la moyenne, pas un intervalle de référence individuel à95%. | |||||||||
| Juvéniles | Adultes | ||||||||
|---|---|---|---|---|---|---|---|---|---|
| Paramètre | Moyenne (±ÉT) | Médiane | Fourchette | 95% IC valeurs moyennes | Moyenne (±ÉT) | Médiane | Fourchette | 95% IC valeurs moyennes | Effet du vieillissement |
| TP (g/l) | 54,7 (5,83) | 53,8 | 46,50 - 73,70 | 52,68 - 56,74 | 63,1 (7,46) | 63,9 | 45,8 - 77,70 | 60,35 - 65,91 | ***↑ |
| Albumine (g/l) | 34,0 (2,87) | 34,4 | 28,60 - 40,60 | 32,97 - 34,97 | 33,1 (5,18) | 33,3 | 19,0 - 45,10 | 31,21 - 35,07 | NS |
| Globuline (g/l) | 21,7 (7,62) | 20,2 | 12,70 - 52,70 | 19,05 - 24,36 | 30,0 (6,10) | 31,9 | 16,50 - 47,80 | 27,71 - 32,26 | ***↑ |
| Albumine : Globuline (ratio) | 1,7 (0,43) | 1,7 | 0,66 - 2,50 | 1,55 - 1,85 | 1,2 (0,35) | 1,1 | 0,40 - 2,58 | 1,03 - 1,29 | ***↓ |
| Glucose (mmol/l) | 9,4 (1,69) | 9,4 | 5,60 - 14,10 | 8,79 - 9,97 | 8,9 (1,68) | 8,9 | 5,40 - 13,10 | 8,27 - 9,52 | NS |
| Urée (mmol/l) | 15,1 (2,57) | 15,9 | 10,80 - 22,0 | 14,16 - 15,96 | 10,1 (1,78) | 10,0 | 6,60 - 14,90 | 9,41 - 10,73 | ***↓ |
| Créatinine (μmol/l) | 56,5 (12,94) | 57,8 | 34,40 - 87,20 | 51,94 - 60,96 | 51,4 (9,50) | 51,0 | 29,9 - 77,30 | 47,91 - 54,99 | NS |
| Triglycérides (mmol/l) | 1,8 (1,0) | 1,5 | 0,01 - 4,47 | 1,47 - 2,16 | 1,9 (1,19) | 1,59 | 0,44 - 4,85 | 1,46 - 2,34 | NS |
| Cholestérol (mmol/l) | 2,5 (0,70) | 2,3 | 1,80 - 4,90 | 2,27 - 2,76 | 2,0 (0,39) | 2,1 | 1,20 - 2,70 | 1,85 - 2,15 | **↓ |
| ALT (iu/l) | 33,5 (18,32) | 29,3 | 12,57 - 107,19 | 27,55 - 40,12 | 18,0 (8,02) | 18,0 | 9,58 - 47,90 | 16,17 - 22,16 | ***↓ |
| AST (iu/l) | 61,1 (35,39) | 53,3 | 10,18 - 192,81 | 48,50 - 73,65 | 47,9 (25,21) | 36,5 | 19,16 - 137,72 | 37,72 - 56,29 | *↓ |
| PAL/ALP (UI/l) | 385,6 (247,26) | 285,0 | 167,66 - 1077,84 | 299,40 - 471,86 | 65,9 (15,03) | 65,3 | 40,72 - 105,99 | 62,87 - 74,25 | ***↓ |
| Amylase (iu/l) | 892,8 (298,38) | 805,4 | 409,58 - 1947,90 | 788,62 - 996,41 | 820,4 (234,01) | 755,7 | 481,44 - 1263,47 | 733,53 - 908,38 | NS |
| Lipase (iu/l) | 43,7 (21,50) | 37,1 | 16,77 - 111,98 | 35,93 - 50,90 | 29,9 (5,45) ‡ | 26,4 | 2,99 - 39,52 | 23,95 - 29,34 | ***↓ |
| GGT (iu/l) | 9,08 (1,50) ‡ | 1,8 | 1,80 - 10,18 | 1,80 - 3,0 | 6,0 (0,05) ‡ | 1,8 | 1,80 - 7,78 | 1,80 - 2,40 | NS |
| CK (iu/l) | 1159,3 (764,13) | 1094,6 | 215,57 - 16012,0 | 752,69 - 2627,55 | 958,1 (846,19) | 692,2 | 120,96 - 4245,51 | 643,71 - 1274,25 | NS |
| LDH (iu/l) | 679,0 (333,11) | 591,0 | 35,33 - 1934,13 | 562,87 - 795,21 | 562,9 (111,02) | 544,9 | 313,17 - 894,01 | 522,16 - 604,79 | NS |
| Sodium (mmol/l) | 142,3 (5,41) | 141,9 | 131,60 - 156,50 | 140,40 - 144,20 | 142,1 (6,32) | 142,7 | 123,0 - 151,20 | 139,80 - 144,50 | NS |
| Potassium (mmol/l) | 4,4 (1,0) | 4,3 | 2,90 - 8,10 | 4,1 - 4,80 | 3,8 (0,40) | 3,9 | 3,10 - 4,70 | 3,69 - 4,0 | **↓ |
| Chloride (mmol/l) | 104,9 (5,56) | 104,8 | 91,20 - 116,40 | 102,90 - 106,80 | 103,4 (5,54) | 103,2 | 91,80 - 113,80 | 101,30 - 105,40 | NS |
| Calcium (mmol/l) | 3,2 (0,26) | 3,1 | 2,69 - 3,73 | 3,075 - 3,26 | 2,5 (0,25) | 2,6 | 2,01 - 2,96 | 2,45 - 2,64 | ***↓ |
| Phosphore inorganique (mmol/l) | 2,2 (0,57) | 2,2 | 1,09 - 3,74 | 1,97 - 2,37 | 1,5 (0,36) | 1,5 | 0,63 - 2,10 | 1,32 - 1,60 | ***↓ |
| Bilirubine totale (μmol/l) | 2,4 (1,37) | 2,4 | 0,90 - 5,40 | 1,91 - 2,86 | 2,8 (1,15) ‡ | 0,9 | 0,90 - 5,40 | 1,40 - 2,33 | NS |
| Acides biliaires totaux (μmol/l) | - | - | - | - | 13,5 (12,21) | 8,2 | 1,10 - 45,90 | 8,94 - 18,04 | - |
| * P<0,05; ** P<0,01; *** P<0,001 | |||||||||
| ↑ Valeurs plus élevées chez les adultes que chez les jeunes. | |||||||||
| ↓ Valeurs plus faibles chez les adultes que chez les jeunes. | |||||||||
| ÉT - Écart type IC - Intervalle de confiance | |||||||||
| ‡ Cette valeur ou son intervalle présente une incohérence ou un arrondi important dans le tableau publié. Reproduction telle qu’imprimée, sans validation indépendante. ÉT=écart type ; IC=intervalle de confiance de la moyenne, pas un intervalle de référence individuel à95%. | |||||||||
Il convient de noter que le niveau de glucose observé en captivité est différent du niveau observé dans la nature 6. Sur un échantillon de 16 octodons sauvages d’âge variable, le niveau de glucose était de 3,89 à 5,39 mmol/l 7.
Concentration urinaire – 634 mOsmol l-1
- Osmolalité moyenne de l’urine en été – 3137 mOsmoles kg-1
- Osmolalité moyenne de l’urine en hiver – 1123 mOsmoles kg-1 8
Taux métabolique de base: 0,839 ml O₂ g⁻¹ h⁻¹
Valeurs historiques non vérifiées indépendamment : l’article initial indiquait une fréquence cardiaque de 274 battements/min et une fréquence respiratoire au repos de 123 respirations/min, attribuées à « Degu Cardio-Pulmonary Values », page 85 d’Exotic Animal Care and Management. La bibliographie de l’autrice identifie le livre de 2008, mais sa page 85 et les mesures d’origine n’ont pas été vérifiées indépendamment ; ces nombres ne doivent pas servir de références cliniques.26
Les mesures respiratoires suivantes proviennent de cinq octodons mâles adultes conscients, non anesthésiés, étudiés par pléthysmographie corporelle à 25–27°C. Il s’agit de moyennes ± erreur standard dans des conditions expérimentales spécifiques, pas d’intervalles de référence cliniques.9
| Mesure | Air ambiant (21% O₂) | Hypoxie (10% O₂) | Hypercapnie (10% CO₂) |
|---|---|---|---|
| Fréquence respiratoire (respirations/min) | 230.68 ± 34.52 | 179.31 ± 17.05 | 205.50 ± 20.40 |
| Volume courant (ml) | 0.18 ± 0.04 | 0.17 ± 0.04 | 0.16 ± 0.03 |
| Volume inspiratoire minute (ml/min) | 40.60 ± 11.65 | 32.31 ± 10.24 | 34.56 ± 7.97 |
Taux moyen de cortisol le plus bas atteint – 500 ng ml-1 10
Sexualité
Maturité sexuelle : entre 7 semaines pour les femelles et 12 semaines pour les mâles 11 Durée du cycle œstral : 18 à 21 jours Durée de gestation : entre 87 et 95 jours Nombre moyen de petits par portée : 5,5 Portées minimales et maximales : 1 à 12 12 Nombre de mamelles : 8…
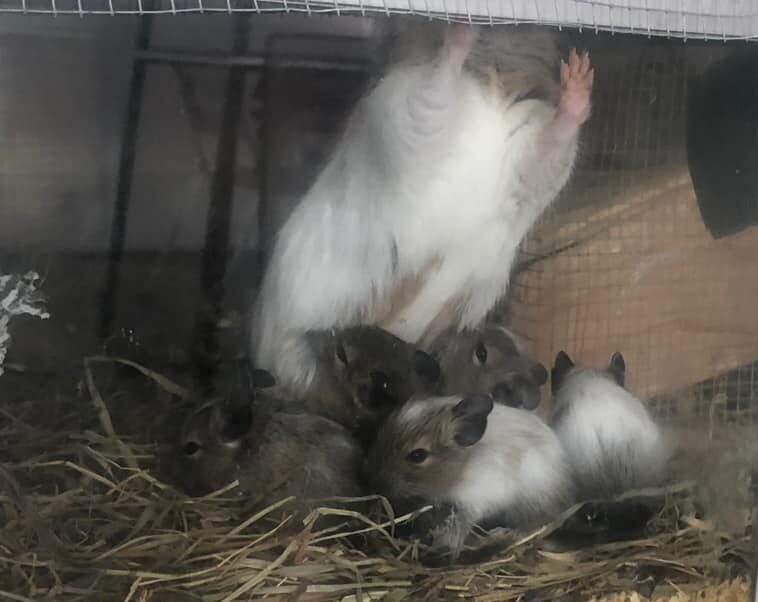
Âge au sevrage : six semaines au minimum selon la recommandation de l’étude d’éruption dentaire ; l’occlusion fonctionnelle complète observée jusqu’au jour 72 est un autre repère.
Âge moyen lors de la première gestation à l’état sauvage: 6 mois
Poids moyen lors de la première gestation : 205 g
Poids minimum recommandé pour la première gestation en captivité : 220 g 13
Rapport des sexes à la naissance: 100 femelles : 110 mâles 14
Poids des bébés 12
| Âge (en jours) | Poids moyen (en grammes) |
| 1 | 13 g |
| 2 | 14 g |
| 3 | 14,5 g |
| 4 | 15 g |
| 5 | 18 g |
| 6 | 19 g |
| 7 | 20 g |
| 8 | 22 g |
| 9 | 23 g |
| 10 | 25 g |
| 11 | 25 g |
| 12 | 26 g |
| 13 | 27 g |
| 14 | 28 g |
Comme pour les premiers jours, des écarts de poids peuvent être notés tout au long de la croissance, augmentant avec l’âge.
| Âge (en semaines) | Poids moyen (en grammes) |
| 0 | 13 g |
| 1 | 20 g |
| 2 | 32 g |
| 3 | 41 g |
| 4 | 58 g |
| 5 | 72 g |
| 6 | 88 g |
Pourcentage de la masse corporelle maternelle à la naissance: 5-6 % Taux de croissance des petits au cours des 14 premiers jours suivant la naissance: 1-3 g/jour Durée de l’allaitement : 21 à 40 jours.
| Taux en % de la composition du lait en milieu d’allaitement 15. | Protéines | Glucides | Lipides | Solides |
| 4,4 | 2,7 | 20,1 | 30,5 |
- Âge de sevrage recommandé : 6 semaines
- Taux moyen de cortisol chez les femelles en lactation – 1000 ng ml-1
- Taux moyen de testostérone chez les mâles adultes reproducteurs: 2,35 ng ml-1 16
- Taux moyen de testostérone le plus élevé (mâle): 0,16 ng ml-1
- Teneur en vitamine C du sperme des caviomorphes : 2,5-12 mg dl-1
- Teneur en ADN gamétique du spermatozoïde: 2,7 pg
- Longueur moyenne de la tête du spermatozoïde: 6,0 μm
- Largeur moyenne de la tête des spermatozoïdes: 4,6 μm
- Longueur moyenne de la queue du spermatozoïde: 40,9 μm
- Noyau du spermatozoïde, emplacement des nucléoles: central
Divers
- Chevauchement du champ visuel (frontal binoculaire): 50º
- Nombre de cellules dans la couche ganglionnaire rétinienne: 300000
- Vitesse maximale d’un octodon de 180 g: 4,9 m/s, soit environ 17 km/h
- Vitesse maximale en sautant – 2,4 m/s, soit environ 8 km/h
- Âge de développement de la fonction circadienne – 10-12 mois
- Nombre de chromosomes (2 n)- 58
- Taille du génome – 8,6 ρg
- Nombre moyen de chiasmes par bivalent : 1,6
- Indice de recombinaison – 73
- Dosage nocif de malathion – 436 mg kg-1
Dose létale de pentobarbital sodique – 60 mg kg-1
Squelette
Le crâne de l’octodon a un grand foramen infra-orbitaire bien développé avec une rainure ventromédiale et une fosse ptérygoïde ouverte 2. L’extrémité de l’hamulus ptérygoïdeus est en contact avec la bulle. Les bulles sont de taille modérée, mais la bulle auditive est bien développée et le processus paroccipital épouse le bord et la surface postérieurs. Fait intéressant, les osselets marteau et enclume ne sont pas fusionnés. Dans la mandibule, les deux rames sont étroitement reliées, le processus coronoïde apparaissant délicat et pointu. La clavicule et la crête deltoïde sont bien développées. L’épine scapulaire s’étend depuis près de la bordure vertébrale de la scapula jusqu’au-delà de la pointe du processus coracoïde. L’épine scapulaire est une mince projection en forme de doigt non soutenue de la région médioscapulaire jusqu’aux extrémités des grands processus acromion et métacromion. Il y a un foramen entépicondyloïde dans l’humérus, et les extrémités proximales du tibia et de la fibula sont fusionnées. 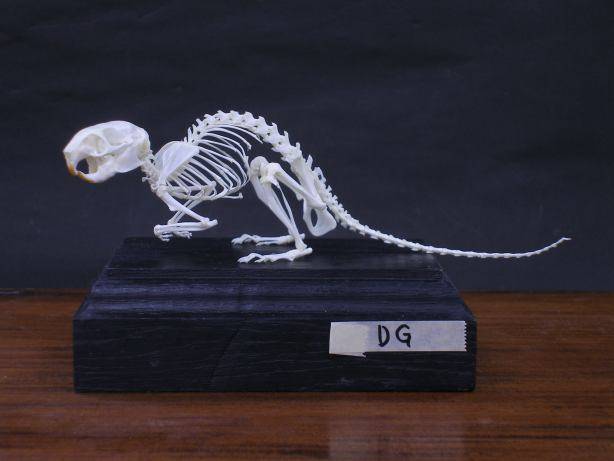
Musculature
Il existe plusieurs caractéristiques myologiques importantes qui distinguent l’octodon 2. Le muscle cutané maximal est complexe et divisé en quatre parties dont la partie antérieure s’étend jusqu’à la surface latérale de l’épaule. Il y a un muscle scapuloclaviculaire, un muscle scalène antérieur ventral au plexus brachial et l’absence d’un muscle stylo-hyoïdien malgré la présence d’un appareil hyoïdien bien développé. Il y a aussi un muscle mandibulolabial composé d’un groupe complexe de muscles masticateurs multipartis, avec le masséter médial passant par le foramen infraorbitaire et la pars reflexa du masséter superficiel passant dans la partie médiale de la mandibule via une rainure. Il est intéressant de noter que la musculature de l’octodon est cohérente avec tous les autres hystricognathes, mais ne se trouve dans aucun autre groupe de rongeurs.
Système vasculaire et thymus
Certains aspects de la circulation chez l’octodon ont été modifiés au cours de l’évolution 17. L’approvisionnement sanguin de la région stapédienne a été remplacé par les artères carotides externes. Il a été rapporté que (à quelques exceptions près) les artères céphaliques de l’octodon sont identiques à celles des autres hystricognathes. L’octodon a à la fois une veine cave antérieure gauche et droite. Il possède un thymus double avec des composants cervicaux et médiastinaux. Le composant médiastinal est multilobé et amorphe, ce qui est morphologiquement similaire à un thymus typique de rongeur. Le composant cervical est bi-lobé et reste actif tout au long de la vie de l’animal, contrairement au composant médiastinal. L’artère coeliaque et l’artère mésentérique proviennent de l’aorte abdominale. Les octodons semblent ne pas avoir d’artère gastroépiploïque. Le caecum est approvisionné en sang par l’artère iléocolique dans la direction de la tête vers l’apex du caecum. Le foie est approvisionné par des branches de l’artère hépatique, avec une branche moyenne droite s’étendant jusqu’à la vésicule biliaire. Le pancréas est approvisionné par l’artère pancréaticododénale crânienne, l’artère pancréaticododénale caudale et l’artère splénique. La rate dorsale est approvisionnée par une branche droite de l’artère gastro-splénique dorsale, tandis que la rate ventrale est approvisionnée par une branche droite de l’artère gastro-splénique ventrale.
Cerveau
Le cerveau de l’octodon suit le schéma général des rongeurs, mais le bulbe olfactif (qui sert à distinguer les odeurs) est particulièrement bien développé 18. Contrairement aux rongeurs, le nerf voméronasal se connecte au bulbe olfactif accessoire latéralement. De plus, il y a une indentation entre la frontière des subdivisions rostrales et caudales du bulbe olfactif, et le bulbe olfactif rostral est deux fois plus grand que le bulbe caudal et présente un dimorphisme sexuel biaisé vers les mâles en termes de taille. Ces caractéristiques uniques sont susceptibles d’être liées à la communication sémiochimique chez les octodons. La surface du cerveau est modérément plissée, ce qui est également une caractéristique inhabituelle chez les rongeurs, à l’exception de ceux appartenant au sous-ordre des Hystricognathes. Le sang est acheminé vers le cerveau uniquement par les artères vertébrales, car les artères carotides internes et les artères stapédiennes tympaniques ont été perdues au cours de l’évolution.
Dentition
Les octodons, comme leurs parents les chinchillas, ont de l’émail orange à la surface avant de leurs incisives avec une microstructure multisériée. Cette coloration se produit pendant l’amélogenèse, lorsque l’émail est formé dans les améloblastes (cellules formant l’émail dentaire). Les amélogénines de l’émail dentaire en développement sont des protéines spécifiques riches en proline, leucine, histidine et résidus glutamyl qui sont synthétisées par les cellules améloblastes de l’épithélium de l’émail interne. Ces protéines se minéralisent pour former un émail mature, supposément régulé par une protéine acide de l’émail appelée tufletin. Le processus exact par lequel l’émail est coloré en orange fait encore l’objet de débats, mais il a été suggéré que l’émail en formation est taché par les enzymes buccales présentes dans la salive des octodons, bien que cela ne soit que de la spéculation. On suppose que de telles enzymes chromogènes sont prises en charge par la pellicule et proviennent de composés polyphénoliques qui fournissent la couleur des aliments, tels que les pigments caroténoïdes. Il peut également y avoir un lien entre la coloration de l’émail et l’apport en fer. Par conséquent, on pense que la nutrition joue un rôle majeur dans la couleur de l’émail des dents des octodons. 
La coloration orange de l’émail des octodons se développe lentement depuis la naissance 19, les petits naissent avec des dents de couleur crème pâle qui foncent progressivement au cours des six premiers mois pour atteindre la couleur orange foncé de l’âge adulte.
Vision
Les octodons ont une vision bien développée et une sensibilité visuelle pendant le jour 20. D’autres espèces nocturnes d’octodons ont une vision adaptée spécialement pour la vision nocturne, améliorant le contraste et la sensibilité à la lumière.
Le cristallin de l’octodon absorbe sélectivement la lumière de courte longueur d’onde 21, avec une densité optique croissante à mesure que l’octodon vieillit. Les rétines des octodons possèdent un type de cône et deux types de cônes S, leur permettant de voir en couleurs dichromatiques. Les couleurs visibles pour les octodons sont le vert et les ultraviolets (UV). Les bâtonnets ont un pic spectral à 500 nm (vert), tandis que chaque type de cône a des pics spectraux à 507 nm (vert) et 362 nm (UV). Les rétines sont composées d’environ 9 millions de photorécepteurs, dont un tiers sont des cônes. Les deux types de cônes existent dans un ratio de 13:1 (vert:UV). Le fait d’avoir des cônes S sensibles aux ultraviolets est relativement rare chez les mammifères. Il a été démontré que les octodons sont capables de distinguer entre les ultraviolets et la lumière visible lors de tests comportementaux 22.
Camouflage
Le pelage des octodons est bien adapté pour se camoufler, leur pelage ventral est plus clair et hautement réfléchissant aux UV ; il réfléchit jusqu’à 20% de la lumière UV 21, suggérant un signal de communication lors des cris d’alarme ou de la vigilance, où les octodons exposent leur ventre en se tenant debout sur leurs membres postérieurs.
L’urine des octodons réfléchit également les UV et jusqu’à 40% de la lumière incidente, agissant comme une marque territoriale visuelle.
Couleur et robes de l’Octodon degus : variations naturelles et nouvelles mutations
Alimentation
Eau
Les octodons possèdent des adaptations à l’économie de l’eau. Les agents mercuriels cités dans les expériences sont des inhibiteurs utilisés pour étudier les canaux à eau : ils ne sont pas un constituant naturel expliquant l’adaptation. Les observations de privation d’eau ne doivent pas être reproduites en captivité, où l’eau fraîche doit rester disponible en permanence.
D’autres études des reins des octodons ont montré qu’ils ont la capacité inhabituelle de concentrer davantage le potassium urinaire que le sodium, et (également inhabituel) de retenir le magnésium.
(Ne pas donner d’alcool à vos octodons!)
Digestion
Les octodons sont herbivores, leur système digestif est spécifiquement adapté à ce régime folivore. Leur tube digestif contient de la sucrase, une enzyme qui hydrolyse les glucides végétaux. Cela permet aux octodons de digérer les sucres spécifiques aux plantes, mais en raison d’une fonction anormale de l’insuline, les octodons devraient éviter les régimes alimentaires contenant du sucre. Les octodons possèdent un caecum 23, qui varie de forme et de position entre les octodons. Le caput caeci est généralement situé à gauche avec une rotation crânienne ou caudale, l’apex étant à gauche devant le pelvis. Le côlon ascendant est disposé en plis superposés variables et souvent en spirale.
Les nouveau-nés possèdent également l’enzyme lactase qui leur permet de digérer le lait maternel.
Les crottes d’octodons sont petites, sèches et compactes.
Système reproductif
Sexer un octodon
Bien que les octodons aient une anatomie génitale différente pour les mâles et les femelles, il peut être assez difficile de les distinguer d’un simple coup d’œil. Leur anatomie urogénitale est similaire à celle des autres caviomorphes 3. Les mâles ont une paire de testicules qui se trouvent toujours à l’intérieur de l’abdomen. Le pénis pointe vers l’arrière depuis le cercle péri-anal, en dessous duquel se trouve (à l’intérieur) le sac crémastérique. Le pénis est stocké à l’intérieur en forme de S et son extrémité est couverte de petites épines. À l’intérieur du corps, le canal déférent et les vésicules séminales s’ouvrent indépendamment dans l’urètre. L’artère testiculaire est courte, avec peu de boucles et un grand diamètre. Un sacculus urétralis est présent. Les femelles ont un utérus bicornu, qui se divise en deux sections. L’ouverture vaginale est située immédiatement (postérieurement) derrière la projection urétrale. Extérieurement, les femelles ont également quatre paires de mamelons, dont trois sont positionnées en hauteur sur les côtés entre les membres antérieurs et postérieurs. Une paire est positionnée sur le ventre entre les membres postérieurs pour permettre la tétée pendant que la femelle est en état de vigilance.
Il y a une plus grande distance entre l’anus et l’urètre chez le mâle, tandis que la femelle n’a pratiquement aucun espace entre l’urètre et l’anus.
Spermatozoïdes
Les spermatozoïdes des octodons sont différents de ceux d’autres espèces 24. La tête mesure 7,7 µm de long sur 5,9 µm de large, tandis que la queue mesure 41 µm de long. La tête est aplatie dorso-ventralement et a une forme ovale. Le contenu en ADN gamétique est d’environ 2,7 pg. Une caractéristique intéressante est qu’il existe un indice de recombinaison élevé pour les rongeurs.
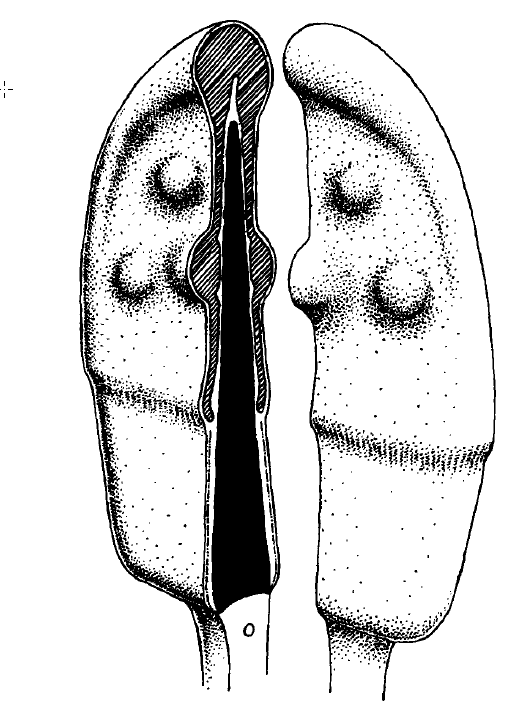
L’acrosome est la caractéristique la plus distinctive dans le spermatozoïde de l’octodon. Vu de face, le rebord de l’acrosome a la forme d’un ‘U’ inversé. La région acrosomale présente des protubérances en forme de dôme qui sont régulières (non aléatoires). L’acrosome représente environ 60 % de la longueur de la tête. Il existe également des différences subtiles dans la morphologie des spermatozoïdes entre les espèces d’octodons. La tête des spermatozoïdes de l’Octodon bridgesi est plus elliptique que ronde, tandis que celle de l’Octodon lunatus est en forme de pagaie et plus large à la base. En moyenne, l’octodon commun a la plus petite longueur de tête de spermatozoïde, l’octodon de Bridge a la plus petite largeur de tête de spermatozoïde, et l’octodon à dents de lune a la plus courte longueur de queue de spermatozoïde.
Ovaire et placenta
Pendant la gestation, le placenta présente une barrière placentaire hémomonochoriale avec des capillaires continus et non fenêtrés 25. Au 27e jour de la gestation, le sous-placenta émerge sous la paroi de l’excavation centrale, et la plus externe des trophoblastes du cône ectoplacentaire commence à se différencier. Ces cellules géantes de trophoblaste secondaire se trouvent à l’extérieur du placenta, formant une interface avec les cellules maternelles de la décidue. Ces cellules contiennent de la cytokeratine et du lactogène placentaire jusqu’à la fin de la grossesse. Pendant la gestation, le trophoblaste extra-sous-placentaire émerge de le sous-placenta vers le décidue. Le mésenchyme vasculaire de l’excavation centrale envahit le placenta chorioallantoïque pendant la gestation pour former deux lobules fœtaux, qui constituent la zone de la barrière placentaire. L’activité de la pompe sodium-potassium ATPase dans les barrières placentaires est constante tout au long de la gestation. Le syncytium résiduel au bord du disque placentaire/entre les lobules n’est pas envahi par le mésenchyme fœtal et forme le syncytium marginal et interlobulaire du labyrinthe. Il est probable que ces cellules aient un processus sécrétoire entre les vaisseaux sanguins maternels. Les placentas expulsés du corps lors de l’accouchement présentent un grand lobe unique, n’ont pas de sous-placenta et un syncytium labyrinthique interlobulaire réduit. Le sac vitellin viscéral inversé peut être vu au jour 27 de la gestation et présente des caractéristiques suggérant qu’il fonctionne comme un organe sécrétoire précoce. L’épithélium du sac vitellin pariétal recouvre l’ensemble du placenta et entre directement en contact avec la lumière utérine. Le poids du placenta à terme est d’environ 8 g et son diamètre est d’environ 13 mm.
Même à un jeune âge, les femelles possèdent un follicule antral dans les ovaires qui n’ovule pas, mais devient atrétique. Le tissu interstitiel est abondant, et les cellules interstitielles sont vacuolisées et sont potentiellement impliquées dans la synthèse de stéroïdes. Pendant la grossesse, le corps jaune persiste, mais peut régresser vers la mise bas. Plusieurs petits corps jaunes accessoires se forment vers la fin (jours 75-80) de la grossesse, persistant jusqu’à 20 jours après la mise bas. D’autres structures présentes dans les ovaires comprennent des tubules époo-phoron et le réseau ovarien.
Sources
Ebensperger, L. A. & Bozinovic, F. (2000). Energetics and burrowing behaviour in the semifossorial degu Octodon degus (Rodentia: Octodontidae). Journal of Zoology, 252(2), 179–186. https://doi.org/10.1111/j.1469-7998.2000.tb00613.x
Woods, C. A., & Boraker, D. K. (1975). Octodon degus. Mammalian Species, (67), 1-5. https://www.jstor.org/stable/3503820?seq=1
Contreras, L. & Bustos-Obregón, E. (1980). Anatomy of reproductive tract in Octodon degus Molina: a nonscrotal rodent. Arch Androl, 4(2), 115-124. https://doi.org/10.3109/01485018008986477
Labyak, S. E. & Lee, T. M. (1995). Estrus- and steroid-induced changes in circadian rhythms in a diurnal rodent, Octodon degus. Physiol Behav, 58(3), 573-585. https://doi.org/10.1016/0031-9384(95)00096-2
Kenagy, G. J., Nespolo, R. F., Vásquez, R. A. & Bozinovic, F. (2002). Daily and seasonal limits of time and temperature to activity of degus. Revista Chilena de Historia Natural, 75(3). https://doi.org/10.4067/S0716-078X2002000300008
Jekl, V., et al. (2011). Selected haematological and plasma chemistry parameters in juvenile and adult degus ( Octodon degus ). Veterinary Record, 169(3), 71-71. https://doi.org/10.1136/vr.d2360
Opazo, J. C., Soto-Gamboa, M. & Bozinovic, F. (2004). Blood glucose concentration in caviomorph rodents. Comparative Biochemistry and Physiology Part A: Molecular & Integrative Physiology, 137(1), 57-64. https://doi.org/10.1016/j.cbpb.2003.09.007
Bozinovic, F., et al. (2003). Seasonal acclimatization in water flux rate, urine osmolality and kidney water channels in free-living degus: molecular mechanisms, physiological processes and ecological implications. J Exp Biol, 206(pt 17), 2959-2966. https://doi.org/10.1242/jeb.00509
Tomasco, I. H., Del Río, R., Iturriaga, R. & Bozinovic, F. (2010). Comparative respiratory strategies of subterranean and fossorial octodontid rodents to cope with hypoxic and hypercapnic atmospheres. Journal of Comparative Physiology B, 180(6), 877–884, Table 1, p. 880. https://doi.org/10.1007/s00360-010-0465-y . https://www.colibri.udelar.edu.uy/jspui/bitstream/20.500.12008/4118/1/uy24-14889.pdf
Kenagy, G. J., Place, N. J. & Veloso, C. (1999). Relation of Glucocorticosteroids and Testosterone to the Annual Cycle of Free-Living Degus in Semiarid Central Chile. General and Comparative Endocrinology, 115(2), 236-243. https://doi.org/10.1006/gcen.1999.7307
Braun, K., et al. (2003). Influence of parental deprivation on the behavioral development in Octodon degus: modulation by maternal vocalizations. Dev Psychobiol, 42(3), 237-245. https://doi.org/10.1002/dev.10096
Long, C. & Ebensperger, L. (2010). Pup Growth Rates and Breeding Female Weight Changes in Two Populations of Captive Bred Degus (Octodon degus), a Precocial Caviomorph Rodent. Reproduction in Domestic Animals, 45(6), 975-982. https://doi.org/10.1111/j.1439-0531.2009.01470.x
Visticot, M.-E. C. (2002). Un nouvel animal de compagnie : l’octodon, Octodon degus. Thèse de doctorat vétérinaire, École nationale vétérinaire d’Alfort. https://theses.vet-alfort.fr/telecharger.php?id=340
Weir, B. J. (1974). Reproductive characteristics of hystricomorph rodents. In I.W.Rowlands&B.J.Weir(Eds.), The Biology of Hystricomorph Rodents. Symposia of the Zoological Society of London,34,265–301. Academic Press. https://www.tiergarten-bernburg.de/Ressourcen_Symposia_of_the_Zoological_Society_of_London.php
VELOSO, C. & KENAGY, G. J. (2005). Temporal dynamics of milk composition of the precocial caviomorph Octodon degus (Rodentia: Octodontidae). Revista chilena de historia natural, 78(2). https://doi.org/10.4067/s0716-078×2005000200008
SOTO- GAMBOA, MAURICIO (2005). Free and total testosterone levels in field males of Octodon degus (Rodentia, Octodontidae): accuracy of the hormonal regulation of behavior. Revista chilena de historia natural, 78(2), 229–238. https://scielo.conicyt.cl/scielo.php?script=sci_abstract&pid=S0716-078X2005000200006&lng=en&nrm=i
Ventura, J., Gispert, E., López-Fuster, M. J. (1996). Arterial vascularization of the abdominal and pelvic regions in the degu, Octodon degus (Rodentia, Octodontidae). Ann Anat, 178(3), 285-291. https://doi.org/10.1016/s0940-9602(96)80072-0
Suárez, R. & Mpodozis, J. (2009). Heterogeneities of size and sexual dimorphism between the subdomains of the lateral-innervated accessory olfactory bulb (AOB) of Octodon degus (Rodentia: Hystricognathi). Behav Brain Res, 198(2), 306-312. https://doi.org/10.1016/j.bbr.2008.11.009
Jekl, V., et al. (2011). Dental eruption chronology in degus (Octodon degus). Journal of Veterinary Dentistry, 28(1), 16–20. https://doi.org/10.1177/089875641102800103
Tomas Vega-Zuniga, et al. (2013). Does Nocturnality Drive Binocular Vision? Octodontine Rodents as a Case Study. PLOS ONE, 8(12), e 84199. https://journals.plos.org/plosone/article?id=10.1371/journal.pone.0084199
Chávez, A. E., et al. (2003). Retinal spectral sensitivity, fur coloration, and urine reflectance in the genus octodon (rodentia): implications for visual ecology. Invest Ophthalmol Vis Sci, 44(5), 2290-2296. https://doi.org/10.1167/iovs.02-0670
Jacobs, G. H., et al. (2003). Visual adaptations in a diurnal rodent, Octodon degus. J Comp Physiol A Neuroethol Sens Neural Behav Physiol, 189(5), 347-361. https://doi.org/10.1007/s00359-003-0408-0
González, H. & Feder, F. (1997). [Variation of the position of the cecum and ascending colon of the degu (Octodon degus, Molina 1782)]. Anat Histol Embryol, 26(4), 305-310. https://doi.org/10.1111/j.1439-0264.1997.tb00141.x
Berrios, M., Flechon, J. E., Barros, C. (1978). Ultrastructure of Octodon degus spermatozoon with special reference to the acrosome. Am J Anat, 151(1), 39-53. https://doi.org/10.1002/aja.1001510105
Bosco, C., et al. (2007). Placentation in the degu (Octodon degus): analogies with extrasubplacental trophoblast and human extravillous trophoblast. Comp Biochem Physiol A Mol Integr Physiol, 146(4), 475-485. https://doi.org/10.1016/j.cbpa.2005.12.013
Long, C. (2007). Degu Cardio-Pulmonary Values. In V. Judah & K. Nuttall, Exotic Animal Care and Management (2008), p. 85. Thomson Delmar Learning. Attribution indiquée par l’autrice dans la référence 158 de Degutopia ; la page du livre et les mesures d’origine n’ont pas été vérifiées indépendamment. https://www.degutopia.co.uk/degurefs.htm